


理化学研究所(理研)生命医科学研究センター タンパク質機能・構造研究チームの白水 美香子 チームディレクター(生命機能科学研究センター 構造生命科学/細胞生物学連携チーム 上級研究員)、久野 玉雄 専任研究員、篠田 雄大 研究員、新野 睦子 上級技師らの共同研究グループは、細胞の形態や運動を制御する分子スイッチCdc42[1]を活性化するタンパク質DOCK11[2]が、いったん活性化したCdc42を利用して自身を細胞膜上に安定化させ、さらにCdc42の活性化を促進する「正のフィードバック機構[3]」の分子レベルの仕組みを明らかにしました。
本研究成果は、DOCK11が関与する先天性免疫異常症やB型肝炎ウイルス感染など、疾患の分子機構の理解や、将来的な創薬研究の基盤となることが期待されます。
「分子スイッチ」として働くCdc42は、細胞の形態や運動、免疫応答などに関わるタンパク質の活性を制御します。DOCKタンパク質は分子スイッチを活性化させる働きを持つ一群のタンパク質です。中でもDOCK11では活性化したCdc42がさらに自身の働きを促進する「正のフィードバック機構」を持ちますが、その分子機構は不明でした。
共同研究グループは、クライオ電子顕微鏡法[4]を用いて、DOCK11単独、不活性型Cdc42が結合した複合体、さらに不活性型Cdc42と活性型Cdc42の二つのCdc42が結合した複合体の立体構造を決定しました。その結果、不活性型Cdc42を活性化させる触媒ドメイン(DHR2ドメイン[5])とは離れたDOCK11のARMドメイン[5]に、活性型Cdc42が直接結合することを明らかにしました。
さらに、細胞膜を模倣した脂質膜上でDOCK11とCdc42の複合体を再構成して構造解析したところ、DOCK11は溶液中で主に見られるU字型の構造から、脂質膜に沿って大きく伸びた構造へ変化することが分かりました。この構造では、DOCK11の複数の膜結合部位とCdc42結合部位が脂質膜面に沿って配置され、活性型Cdc42との結合によってDOCK11が脂質膜上に安定して保持されることで、膜に結合した不活性型Cdc42を効率よく活性化できることが示されました。
本研究は、科学雑誌『Proceedings of the National Academy of Sciences of the United States of America(PNAS)』オンライン版(10月6日付)に掲載されました。
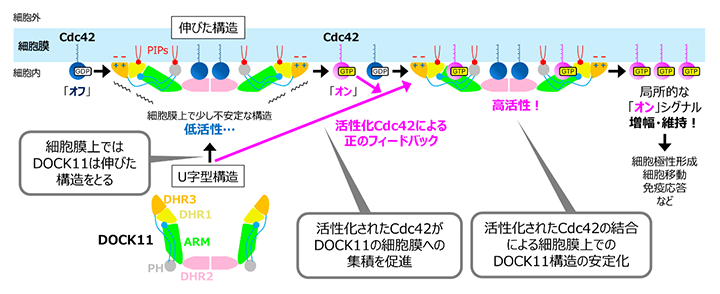
細胞膜上におけるDOCK11の正のフィードバックによるCdc42増幅メカニズム
背景
細胞は、外部から受け取ったさまざまな情報を細胞内へ伝える「シグナル伝達」によって、形態、運動、増殖などを制御しています。その中で、Rhoファミリー低分子量Gタンパク質[1]は、グアノシン二リン酸(GDP)が結合した不活性型(オフ)とグアノシン三リン酸(GTP)が結合した活性型(オン)に切り替わる「分子スイッチ」として働きます。Cdc42はその代表的な分子の一つで、アクチン細胞骨格[6]を制御し、細胞移動、免疫応答などに重要な役割を果たします。
DOCKファミリータンパク質[2]は、分子スイッチ(RacやCdc42)に結合したGDPをGTPへ交換する反応を促進するグアニンヌクレオチド交換因子(GEF)[2]です。哺乳類には11種類のDOCKタンパク質が存在し、DOCK11は主にCdc42を活性化します。DOCK11は免疫系を含む多くの組織で発現しており、近年ではDOCK11の機能を喪失させる変異が免疫不全や免疫調節異常などを伴う先天性疾患の原因となることも報告されています注1)。また、DOCK11がB型肝炎ウイルスの感染や持続に関与するとの報告もあり注2)、その機能制御機構が注目されています。
これまでの研究で、DOCK11の働きで活性化されたCdc42がDOCK11に結合してDOCK11の働きを促進し、より多くのCdc42を活性化する「正のフィードバック機構」によってDOCK11の働きが調節されることが示唆されていました。しかし、活性型Cdc42がDOCK11のどこに結合するのか、またその結合がどのようにDOCK11の機能を高めるのかについては、分子レベルの仕組みが分かっていませんでした。
そこで共同研究グループは、クライオ電子顕微鏡法を用いてDOCK11とCdc42の複合体の構造を解析するとともに、細胞膜を模倣した脂質膜上での構造解析、生化学実験、細胞を用いた機能解析を組み合わせ、DOCK11の正のフィードバック機構の解明に取り組みました。
- 注1)Block et al., Systemic inflammation and normocytic anemia in DOCK11 deficiency. N. Engl. J. Med. 389, 527-539 (2023). Boussard et al., DOCK11 deficiency in patients with X-linked actinopathy and autoimmunity . Blood. 141, 2713-2726 (2023).
- 注2)Li et al., Hepatitis B virus utilizes a retrograde trafficking route via the trans-Golgi network to avoid lysosomal degradation. Cell. Mol. Gastroenterol. Hepatol. 15, 533-558 (2023).
研究手法と成果
共同研究グループは今回、活性型Cdc42が結合する新たな部位を発見し、活性化されたCdc42との結合がDOCK11の細胞膜への集積を促進、安定化させることを見つけ、そのDOCK11が細胞膜上で大きく形を変える様子を可視化しました。その結果、「活性化したCdc42が次のCdc42活性化を促す」仕組みを突き止めました。具体的には次の通りです。
まず共同研究グループは、全長DOCK11単独、DOCK11と不活性型Cdc42との複合体、さらに不活性型Cdc42と活性型Cdc42の両方が結合した複合体について、クライオ電子顕微鏡法による立体構造解析を行いました。DOCK11は二量体を形成し、溶液中では主にU字型の構造を取っていました(図1A)。不活性型Cdc42は、これまで知られていた触媒ドメインDHR2に結合していました。一方、活性型Cdc42はDHR2とは離れたARMドメインと呼ばれる領域に結合していることが明らかになりました(図1B)。この結果は、DOCK11が、「これから活性化するCdc42」と「すでに活性化されたCdc42」を、それぞれ異なる場所で同時に認識できることを示しています。さらに、結合部位のアミノ酸を置換したDOCK11変異体を用いて解析したところ、この変異によって活性型Cdc42との結合が低下しました。
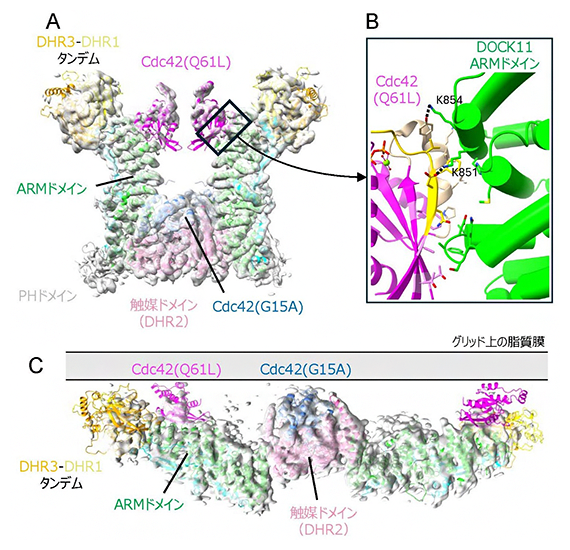
図1 DOCK11とCdc42(G15A) とCdc42(Q61L) との三者複合体の構造
- (A)従来のグリッド作成法によって得られた溶液中での三者複合体の電顕密度図とそれにフィッティング(モデル化)させた複合体モデル。DOCK11はドメインごとに色分けしている(ARMドメイン、触媒ドメイン(DHR2ドメイン)はそれぞれ緑とピンク)。Cdc42(G15A)(青)はヌクレオチド非結合型変異体、Cdc42(Q61L)(マゼンタ)は活性型変異体。それぞれ不活性型、活性型Cdc42を模倣するものとして用いた。本文中では簡潔にするためにそれぞれの変異体を不活性型、活性型Cdc42と表す。DOCK11はDHR2ドメインで会合して二量体を形成し、U字型の構造をとる。Cdc42(G15A)はDHR2ドメインに結合している。Cdc42(Q61L)はARMドメインに結合しており、この状態を捉えたのは本研究が初めてである。
- (B)Cdc42(Q61L)とARMドメインの結合領域の拡大図。主に疎水性相互作用によって結合し、さらにいくつかの塩橋(イオン性相互作用)や水素結合が形成される。DOCK11の二つのリジン残基(K851、K854)がCdc42(Q61L)の結合に関与していることが変異体を用いた解析により分かった。
- (C)白水チームディレクターらが開発した脂質膜グリッド作成法によって得られた脂質膜結合状態の三者複合体の電顕密度図とフィッティングさせた複合体モデル。DOCK11のDHR3-DHR1タンデム(連結)領域と、両Cdc42が脂質膜平面上に同時に結合するようにDOCK11が伸びた構造をとることが分かった。
次に、活性化されたCdc42との結合がDOCK11の機能にどのような影響を及ぼすかを調べました。人工脂質膜を用いた実験では、膜に結合した活性型Cdc42の存在によって、DOCK11のCdc42活性化能が約2.5倍に高まりました。一方、活性型Cdc42が膜に結合していない場合には、この活性促進効果は見られませんでした。さらに、活性型Cdc42との結合を弱めたDOCK11変異体では、この活性促進効果が失われました。細胞内でも、DOCK11はCdc42が活性化される条件で細胞膜に集積しましたが、活性型Cdc42との結合部位に変異を導入すると膜への集積が低下しました。また、この変異体ではCdc42の活性化や、Cdc42によって誘導されるフィロポディア[7]形成も低下しました。
これらの結果から、活性化したCdc42との結合がDOCK11を細胞膜上に保持し、DOCK11によるさらなるCdc42活性化を促すことが示されました。
では、なぜ細胞膜に結合するとDOCK11はCdc42を効率よく活性化できるのでしょうか。
共同研究グループは、クライオ電子顕微鏡で観察する試料を載せる専用基板(グリッド)上に人工脂質膜を形成する手法注3、4)を用いて、その膜上にDOCK11とCdc42を再構成し、構造解析を行いました。その結果、溶液中では主にU字型だったDOCK11が、脂質膜上では大きく伸びた構造をとることが分かりました(図1C)。そして、U字型構造との比較から、DOCK11内部の大きな回転運動によって、この構造変化が生じることを明らかにしました。
この伸びたDOCK11では、脂質と相互作用するDHR3-DHR1タンデム(連結)[5]領域、不活性型Cdc42を活性化するDHR2ドメイン、さらに活性化されたCdc42が結合するARMドメインが、いずれも細胞膜に結合するのに適した位置へ並びます。すなわち、この構造変化によってDOCK11は膜に沿って配置され、膜上に存在する不活性型Cdc42を効率よく取り込むと同時に、すでに活性化されたCdc42によって膜上に保持される構造を形成します。
以上の結果から、共同研究グループはDOCK11による正のフィードバックのモデルを提唱しました(図2)。
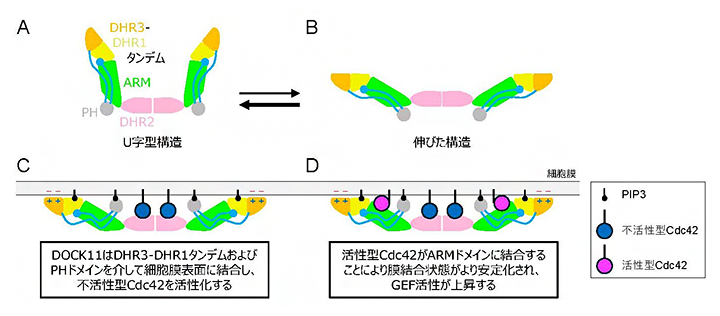
図2 DOCK11における正のフィードバックによるGEF活性調節機構
- (A、B)DOCK11は細胞質中では主にU字型の構造をとるが、伸びた構造もとる。
- (C)DOCK11は伸びた構造となって細胞膜表面に結合する。その際、DHR3-DHR1タンデム領域およびPHドメイン(脂質結合ドメインの一種)で、ホスファチジルイノシトール三リン脂質(PIP3)およびホスファチジン酸などの酸性の脂質と結合することで、DOCK11は細胞膜表面にとどまることができ、細胞膜にアンカーされている不活性型Cdc42に作用することができる。
- (D)活性化されたCdc42がDOCK11のARMドメインに結合することで、DOCK11は細胞膜上により長くとどまり、より多くの不活性型Cdc42を活性化することができるようになる。
刺激がない状態では、DOCK11は細胞質中で主にU字型構造を取っています。細胞が刺激を受けると、細胞膜にPIP3[8]などの脂質が集積し、DOCK11が細胞膜へ呼び寄せられます。DOCK11は細胞膜上で伸びた構造を取り、膜に存在するCdc42(GDP結合型)を活性化します。ここで産物として生じた活性型Cdc42(GTP結合型)がDOCK11のARMドメインに結合すると、DOCK11の膜への結合がさらに安定化します。膜上にとどまったDOCK11は、次のCdc42を効率よく活性化できるため、さらに活性化されたCdc42が増えます。
つまり、「Cdc42の活性化→活性化されたCdc42がDOCK11に結合→DOCK11が膜上に安定化→さらにCdc42を活性化→活性化されたCdc42がさらに増加」という正のフィードバックが形成されます。
この仕組みによって、細胞は特定の膜領域においてCdc42シグナルを局所的に増幅・維持し、細胞骨格や膜形態を時間的・空間的に制御していると考えられます。
- 注3)2025年11月13日プレスリリース「細胞膜がタンパク質の形を変える鍵だった」
- 注4)脂質膜貼付グリッドの作製作業を解説したYouTube動画「Lipid Membrane-Coated Gridの作製」
今後の期待
Cdc42は、細胞移動、免疫応答など幅広い生命現象を制御する重要な分子スイッチです。本研究により、Cdc42を活性化するDOCK11が、自らがつくり出した活性型Cdc42を利用して細胞膜上にとどまり、さらにCdc42を活性化するというシグナル増幅の分子機構が明らかになりました。
このような「反応生成物が触媒反応をさらに促進する」正のフィードバックは、細胞内でシグナルを局所的に増幅し、一定時間維持する上で重要な仕組みです。今回明らかになったDOCK11の立体構造は、細胞膜が単なる反応の「場」ではなく、シグナル伝達関連タンパク質の配置や構造を変化させ、その機能を制御する役割を持つことも示しています。
また、DOCK11の機能喪失は先天性免疫異常症との関連が報告されているほか、DOCK11はB型肝炎ウイルスの感染・持続にも関与することが示されています。そのため、本研究で得られたDOCK11とCdc42の相互作用や膜上での構造に関する情報は、DOCK11が関与する疾患の分子機構の理解や、将来的な創薬研究の基盤となることが期待されます。
さらに、今回行った、脂質膜を貼付した観察用グリッドを用いたクライオ電子顕微鏡法は、膜との相互作用によって機能するシグナル伝達タンパク質を、より生理的な状態に近い環境で解析する手法として、今後さまざまな膜関連タンパク質へ応用できると期待されます。
補足説明
- 1.Cdc42、Rhoファミリー低分子量Gタンパク質
Rhoファミリー低分子量Gタンパク質はGDP結合型の不活性状態とGTP結合型の活性状態を切り替えることで、細胞内の「分子スイッチ」として働くタンパク質群。Cdc42はRhoファミリー低分子量Gタンパク質の一員で、アクチン細胞骨格([6]参照)、細胞移動などを制御する。 - 2.DOCK11、DOCKファミリータンパク質、グアニンヌクレオチド交換因子(GEF)
DOCKファミリータンパク質は、RacやCdc42などのRhoファミリー低分子量Gタンパク質を活性化するグアニンヌクレオチド交換因子(GEF)。GEFは、GDPが結合した不活性型Gタンパク質からGDPを解離させ、GTPを結合させて活性型Gタンパク質を生成する。哺乳類には11種類のDOCKタンパク質があり、四つのサブファミリーに分けられる。DOCK11はDOCK-Dサブファミリーに属し、主にCdc42を活性化する。DOCKはdedicator of cytokinesisの略。GEFはguanosine nucleotide exchange factorの略。 - 3.正のフィードバック機構
ある反応によって生じた産物やシグナルが、その反応をさらに促進する制御機構。本研究では、DOCK11によって活性化されたCdc42がDOCK11に結合してその膜局在を安定化し、DOCK11がさらにCdc42を活性化する。 - 4.クライオ電子顕微鏡法
タンパク質などの試料を液体エタン中で急速凍結し、透過型電子顕微鏡(クライオ電子顕微鏡)で撮影することで、その立体構造を解析する手法。 - 5.DHR2ドメイン、ARMドメイン、DHR3-DHR1タンデム(連結)
これらはDOCKファミリーで保存されている四つのドメイン。ARMドメインは、ARM(armadillo)リピートと呼ばれる特徴的な配列の繰り返し構造を持つドメイン。さまざまなタンパク質において、他のタンパク質を認識する足場として働く。本研究では、DOCK11のARMドメインが活性型Cdc42を直接認識することが明らかになった。DHR2ドメインは、不活性型Cdc42に結合したGDPをGTPに交換する反応を触媒する働きを持つドメイン。DHR3-DHR1タンデムは、二つのドメインが密に相互作用してひとまとまりの構造をしたもの。細胞膜の脂質分子に結合する。 - 6.アクチン細胞骨格
細胞の骨格として、また運動を調節するために必要な繊維状の構造で、アクチンタンパク質が重合して形成される。アクチンが重合、脱重合することによって細胞の形態や運動が制御される。 - 7.フィロポディア
細胞表面に形成される細長い指状の突起構造。主にアクチンフィラメントから構成され、細胞の移動や周囲の環境の探索などに関与する。Cdc42の活性化によって形成が促進される。 - 8.PIP3
ホスファチジルイノシトール-3,4,5-三リン酸(phosphatidylinositol-3,4,5-trisphosphate)の略称。細胞膜に存在するリン脂質の一種で、細胞外からの刺激に応じて局所的に増加し、さまざまなシグナル伝達系タンパク質を細胞膜へ呼び寄せる役割を持つ。
共同研究グループ
理化学研究所
生命医科学研究センター タンパク質機能・構造研究チーム
チームディレクター 白水 美香子(シロウズ・ミカコ)
(生命機能科学研究センター 構造生命科学/細胞生物学連携チーム 上級研究員)
専任研究員 久野 玉雄(ヒサノ・タマオ)
研究員 篠田 雄大(シノダ・タケヒロ)
上級技師 新野 睦子(ニイノ・ムツコ)
上級テクニカルスタッフ 桂 一茂(カツラ・カズシゲ)
テクニカルスタッフⅠ 桂 芳子(カツラ・ヨシコ)
テクニカルスタッフⅠ 花田 和晴(ハナダ・カズハル)
テクニカルスタッフⅠ 矢吹 有香子(ヤブキ・ユカコ)
生命機能科学研究センター プロテオミクス・質量分析支援チーム
上級技師 中川 れい子(ナカガワ・レイコ)
国立長寿医療研究センター 研究所 共同研究推進部
部長 錦見 昭彦(ニシキミ・アキヒコ)
研究員 近藤 遼平(コンドウ・リョウヘイ)
研究支援
本研究は、科学技術振興機構(JST)戦略的創造研究推進事業CREST「クライオ電顕によるDOCKシグナロソームの動的構造の解明(研究代表者:白水美香子)」、理研新領域開拓課題「細胞内環境の生物学」、日本学術振興会(JSPS)科学研究費助成事業、国立長寿医療研究センター長寿医療研究開発費、日本医療研究開発機構(AMED)生命科学・創薬研究支援基盤事業(BINDS)の助成を受けて行われました。
原論文情報
- Tamao Hisano*, Takehiro Shinoda*, Mutsuko Kukimoto-Niino*, Kazushige Katsura, Ryohei Kondo, Yoshiko Ishizuka-Katsura, Yukako Miyata-Yabuki, Kazuharu Hanada, Reiko Nakagawa, Akihiko Nishikimi, Mikako Shirouzu(*共同筆頭著者), "Structural basis for membrane-dependent positive feedback regulation of DOCK11 by activated Cdc42", Proceedings of the National Academy of Sciences of the United States of America, 10.1073/pnas.2607665123
発表者
理化学研究所
生命医科学研究センター タンパク質機能・構造研究チーム
チームディレクター 白水 美香子(シロウズ・ミカコ)
(生命機能科学研究センター 構造生命科学/細胞生物学連携チーム 上級研究員)
専任研究員 久野 玉雄(ヒサノ・タマオ)
研究員 篠田 雄大(シノダ・タケヒロ)
上級技師 新野 睦子(ニイノ・ムツコ)
報道担当
理化学研究所 広報部 報道担当
お問い合わせフォーム