


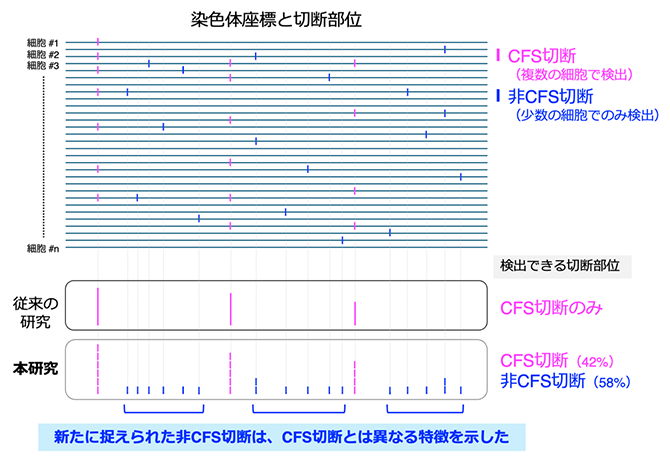
理化学研究所(理研)生命機能科学研究センター 発生エピジェネティクス研究チームのジョティヴァナン・エルマライ 研修生(神戸大学 大学院医学研究科 博士課程)と平谷 伊智朗 チームディレクター(神戸大学 大学院医学系研究科 客員教授)の研究チームは、研究室で独自に開発した1細胞ゲノム解析技術を用いて、哺乳類のゲノム[1]の「壊れやすい領域」を網羅的に解析しました。その結果、染色体切断[2]が生じやすい部位には、これまで知られていなかった、特徴の異なる複数のクラスが存在することを発見しました。また、各クラスの染色体切断はそれぞれ異なる機構によって生じ、切断の生じやすさは切断部位周囲のゲノム領域がもともと持つ特徴と関連していることも明らかにしました。
本研究成果は、染色体の脆弱性(ぜいじゃくせい)についての理解を大きく広げるもので、がんをはじめとする疾患に関わるゲノム不安定性の解明に向けた今後の研究基盤となることが期待されます。
細胞は、分裂する前にDNAを正確に複製[3]する必要があります。しかし、DNA複製[3]は細胞内外のさまざまな要因によって妨げられることがあり、この状態は「複製ストレス[4]」と呼ばれます。複製ストレスは染色体切断やゲノム再編成[5]を引き起こすことがあり、こうした異常はがんをはじめとするさまざまな疾患で高頻度に認められます。これまで、細胞生物学の分野では、複製ストレスによって高頻度に切断されるゲノム領域である「染色体脆弱部位(CFS)[6]」が主に研究対象とされてきました。しかし、従来の解析法は、繰り返し生じる染色体切断は検出しやすい一方、一部の細胞でしか生じない低頻度の染色体切断を捉えることは技術的に困難でした。そのため、複製ストレスによって壊れやすいゲノム領域の全体像は明らかになっていませんでした。
この問題を克服するため、研究チームは、独自に開発した1細胞全ゲノムDNA複製解析法「scRepli-seq」[7]を用いて、複製ストレスによって生じる染色体切断部位を個々の細胞で解析しました。その結果、既知のCFSを検出できただけでなく、従来法では見逃されていた低頻度の染色体切断部位も多数捉えることに成功しました。さらに、これらの染色体切断が、異なる特徴や形成機構を持つ複数のクラスに分類できることも明らかにしました。
本研究は、科学雑誌『Nature Communications』オンライン版(9月23日付:日本時間9月23日)に掲載されます。
1細胞解析による複数の新たな染色体脆弱部位の同定
背景
ゲノム、すなわち細胞が持つDNAの全体を正確に維持することは、正常な発生や組織の維持、疾患の予防に不可欠です。細胞は、分裂する前にゲノムDNAを正確に複製する必要があります。真核生物では、ゲノム全体が一斉に複製されるのではなく、ゲノム上の領域ごとに複製される時期が異なり、これをDNA複製タイミング制御と呼びます。さらにDNA複製は、細胞内外のさまざまな要因によって遅延または停止することがあり、この状態は「複製ストレス」と呼ばれます。複製ストレスは染色体切断やゲノム再編成を引き起こすことがあり、こうした異常はがんをはじめとするさまざまな疾患で高頻度に認められます。
このような「壊れやすい」ゲノム領域は特定の場所に集中する傾向が知られています。その代表例が、複製ストレス下で高頻度に切断される染色体脆弱部位(CFS)です。CFSは、その発見から40年以上にわたり、主に染色体の異常を顕微鏡で観察する細胞遺伝学的解析を用いて研究されてきました。一方近年では、多数の細胞をまとめて解析し、複製ストレスによってDNA複製が完了せず、細胞分裂直前までDNA複製が続いているゲノム領域をシーケンス解析によって網羅的に調べることで、CFSを検出する手法も用いられています。しかし、こうした従来法は、多くの細胞で高頻度に生じる切断部位の検出には威力を発揮しますが、一部の細胞でしか生じない低頻度の染色体切断を捉えることは困難でした。そのため、既知のCFSが複製ストレスによって切断されやすいゲノム領域の全体像を表しているのか、あるいは、これまで検出されていない低頻度の脆弱部位がさらに存在するのかは明らかではありませんでした。この問いに答えるには、染色体切断を偏りなく網羅的に捉え、切断部位が既知のCFSのみなのか、それともCFS以外にも存在するのか、さらに、それぞれがどの程度の割合を占めるのかを明らかにする必要があります。
研究手法と成果
染色体切断を1細胞レベルでゲノム全体にわたって網羅的に捉えるため、研究チームは、ヒトのがん細胞を対象に、研究室で開発した1細胞全ゲノムDNA複製解析法「scRepli-seq」注1、2)による解析を行いました。この手法は、もともとはS期[8]細胞のDNA複製が進行していく過程を1細胞レベルで解析するために開発されたものですが注3)、G1期[8]細胞を対象にすればDNAコピー数[7]をゲノム全体にわたって解析することもできます。数百万個の細胞から得られたデータを平均化する従来法とは異なり、scRepli-seqでは個々の細胞に生じたDNAコピー数変化を検出できるため、低頻度の染色体切断も捉えることができます。研究チームは、細胞に複製ストレスを誘導(アフィジコリン処理[4])した後、DNAコピー数変化と切断部位をゲノム全体にわたってマッピングしました(図1A~C)。
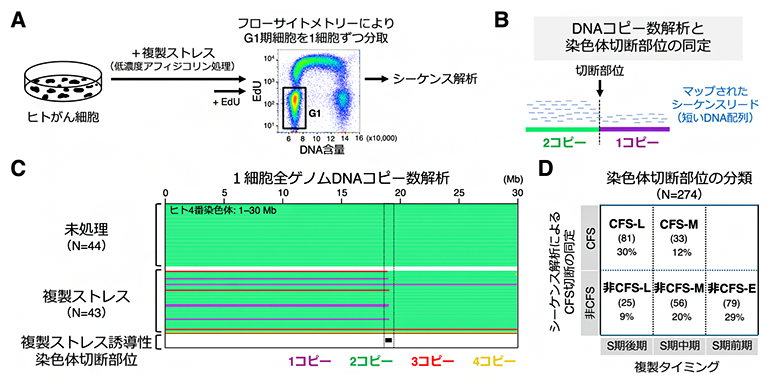
図1 複製ストレスによって誘導された染色体切断部位の同定と分類
- A)実験の概要。ヒトのがん細胞(骨肉腫由来のU2OS細胞)に複製ストレスを誘導(低濃度アフィジコリン処理)した後、細胞を固定し、細胞内のDNA量などを測定して目的の細胞を選別するフローサイトメトリーという手法(今回の実験では、DNA量と、DNA合成を検出するための核酸類似体EdUの取り込み量を測定)を用いてG1期の細胞を1細胞ずつ回収した。その後、ゲノムDNAを抽出し、シーケンス解析を行った。
- B)データ解析の概要。シーケンス解析で得られた短いDNA配列(リード)をゲノムにマッピングし、DNAコピー数を解析した。染色体切断の痕跡は、G1期の娘細胞にDNAコピー数の変化として残ることがある。そこで、隣り合う二つのゲノム領域でDNAコピー数が異なる場合、その境界を染色体切断部位と定義した。
- C)1細胞レベルのDNAコピー数解析の代表例。複製ストレスを誘導した43個の細胞と、未処理の44個の細胞について、全ゲノムDNAコピー数を解析した。ここでは代表例として、ヒト4番染色体の一部の解析結果を示す。未処理細胞では見られず、複製ストレスを誘導した細胞でのみ検出されたDNAコピー数変化の境界を、複製ストレスによって生じた染色体切断部位として同定した(下部の黒線。下の数字は各切断部位が観察された細胞数)。上部の数字は、染色体上の位置を100万塩基対(=1Mb、Mbは100万塩基対)単位で示したもの。
- D)染色体切断部位の分類。横軸をDNA複製タイミング(S期後期、S期中期、S期前期)、縦軸を細胞集団のシーケンス解析によって同定された既知のCFSとの重なりの有無(CFS、非CFS)として、マトリクスで分類した。その結果、二つのCFS切断クラス(CFS-L、CFS-M)に加えて、三つの非CFS切断クラス(非CFS-L、非CFS-M、非CFS-E)が見いだされた。
この方法により、過去に報告されているCFSを複数の細胞で繰り返し検出することができました。検出された全ての染色体切断のうち、約半数は既知のCFSに相当していました。一方、従来法では捉えられていなかった多数の非CFS切断も新たに検出されました。そこで研究チームは、検出された染色体切断を、既知のCFSとの重なりの有無(CFSまたは非CFS)とDNA複製タイミング(L:S期後期、M:S期中期、E:S期前期)に基づいて分類し、五つの切断部位クラス(CFS-L、CFS-M、非CFS-L、非CFS-M、非CFS-E)を定義しました(図1D)。
五つの切断部位クラスは、ゲノム上の特徴やDNA複製の挙動が互いに大きく異なっていました。従来型のCFSに相当する二つのクラス(CFS-LとCFS-M)は、転写活性の高い長い遺伝子(30万塩基対以上)の近傍にあり、複製ストレス下では、S期に複製が完了せず、G2/M期[8]になってもDNA複製が未完了の領域が認められました(図2A)。一方、新たに同定された非CFSクラスは、CFSとは異なるゲノム上の特徴やDNA複製に関連する性質を示しました。例えば、S期中期に複製される非CFS-Mのうち、複製ストレスによって複製タイミングが遅延した切断部位は、複製ストレスを与えていない状態で、複製タイミングがS期前期から後期へと急激に変化する複製タイミング遷移領域[9]やA/Bコンパートメント境界[10]に多く存在していました(図2B)。これに対して、S期前期に複製される非CFS-Eのうち、複製ストレスによって複製タイミングが早まった切断部位では、転写とDNA複製の衝突[11]に関連する特徴が高頻度で認められました(図2C、D)。以上の結果から、染色体切断は単一の共通機構によって生じるのではなく、複数の異なる機構によって生じることが示唆されました。
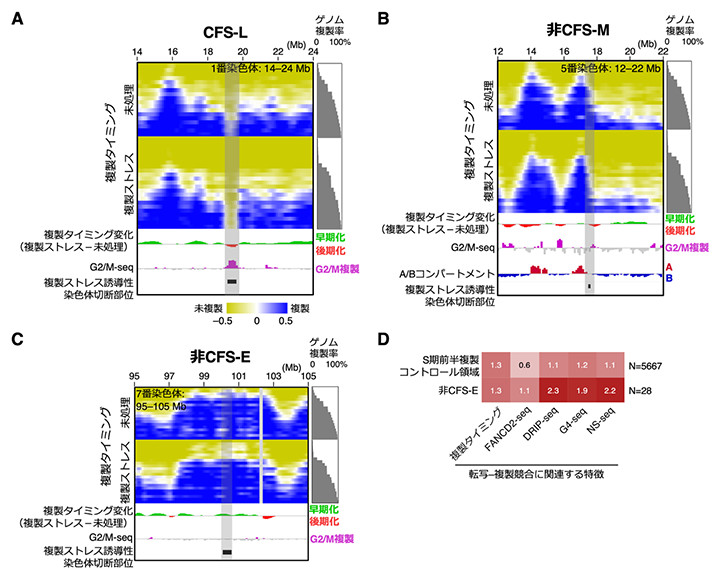
図2 染色体切断クラスごとに異なるDNA複製タイミングとゲノム上の特徴
三つの染色体切断クラス(CFS-L、非CFS-M、非CFS-E)について、複製ストレスを受けなかった細胞(未処理)と受けた細胞(アフィジコリン処理)の複製タイミングを比較した。この複製タイミング図では、S期の経過時間(複製率0→100%)の順にデータを上から並べ、複製された領域を青で、未複製の領域を黄色で示している。複製ストレスを受けていない細胞ではS期終了時に染色体全域が青色になるが、S期が終了しても未複製の領域が残された場合は、その領域が黄色のままとなる。
- A)ヒト1番染色体の14~24MbのDNA複製タイミングプロファイルと、18~20Mb付近に存在する代表的なCFS-L切断部位を薄いグレーのハイライトで示した。複製ストレス(アフィジコリン処理)によって複製タイミングが後期化し(複製タイミング変化のグラフにおいて赤で示す領域)、G2/M期になってもDNA複製が完了していない領域が認められた(=G2/M-seqの紫の高い値を示す領域)。なお、この傾向は非CFS-Mでも同様に見られた。
- B)ヒト5番染色体の12~22Mbにおいて、複製ストレスによって複製タイミングが遅延した代表的な非CFS-M切断部位(薄いグレーのハイライト領域;18Mb付近)。非CFS-M切断部位は、複製タイミングがゲノム上で急激に青色から黄色に変化する「急勾配」の領域や、A/Bコンパートメント境界に多く存在し、複製ストレスによってG2/M期になってもDNA複製が完了していない領域も認められた。
- C)ヒト7番染色体の95~105Mbにおいて、複製ストレスによって複製タイミングが早まった(複製タイミング変化のグラフにおいて早期化を表す緑で示される)代表的な非CFS-E切断領域(薄いグレーのハイライト領域;100Mb付近)を示す。
- D)非CFS-E切断領域では、複製タイミングがS期前半で同程度のゲノム領域から無作為に選んだコントロール(対照)領域と比較して、DNA修復に関わるタンパク質FANCD2の結合領域(FANCD2-seq)、RNAがDNAとハイブリッドを形成したRループ(DRIP-seq)、G4構造(G4-seq)、DNA複製開始点(NS-seq)など、転写・複製衝突に関連する複数の特徴がより高頻度に認められた。
クラスごとに異なる機構で染色体切断が生じるのかをさらに検証するため、研究チームは転写を阻害する薬剤で細胞を処理し、染色体切断と転写との関係を調べました(図3A)。その結果、新たに同定された非CFS-Mや非CFS-Eでは転写を阻害すると切断部位におけるDNA損傷が減少する一方、CFS-Mでは転写阻害による影響は認められませんでした(図3B)。CFS-Lでも同様に、転写阻害による影響は認められませんでした。また、非CFSの中でもクラスごとに転写阻害に対する応答が異なっており、染色体切断における転写の関与、ひいては切断が生じる機構がクラス間で異なることが改めて示唆されました。
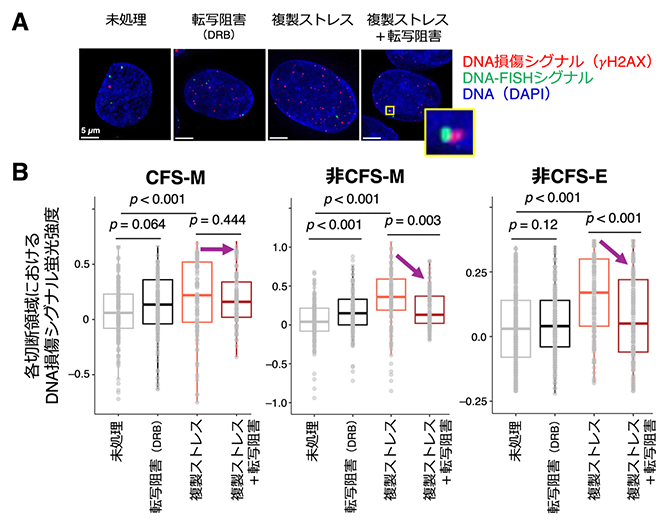
図3 クラスによって異なる染色体切断と転写阻害の関係
- A)各切断クラスの転写依存性を検証するため、染色体上の特定領域を蛍光標識したDNAプローブで検出するDNA-FISHと、DNA損傷を抗体で検出する免疫蛍光染色を組み合わせた免疫FISH解析を行った。細胞核のDNAをDAPIという蛍光色素で染色し(青)、各クラスを代表する切断領域をDNA-FISH法で可視化した(緑、図にはCFS-L領域の例を示す)。転写阻害剤DRBの存在下または非存在下において、切断領域に生じたDNA損傷をγH2AXの免疫蛍光シグナル(赤)として定量した。未処理、転写阻害(DRB)、複製ストレス(アフィジコリン処理)、複製ストレス+転写阻害の各処理条件で、赤色の蛍光シグナルの数が異なることが分かる。黄色で囲んだ拡大図は、切断領域に生じたDNA損傷を示す例。スケールバーは5マイクロメートル(μm、1μmは100万分の1メートル)。
- B)Aの観察結果を定量解析したグラフ。CFS-M領域における複製ストレス(アフィジコリン処理)誘導性のDNA損傷(γH2AX)シグナルは、転写阻害剤(DRB)の影響を受けなかった(紫の横向き矢印)。一方、非CFS-Mおよび非CFS-E切断部位のDNA損傷シグナルは転写阻害剤によって減少したことから(紫の下向き矢印)、これらの切断には転写が関与しており、CFS-Mとは異なる機構によって生じることが示唆された。
さらに研究チームは、複製ストレス下にない細胞におけるDNA複製タイミングのパターンが切断部位クラスごとに異なることを見いだしました(図4A)。そこで、DNA複製タイミングのパターンの違いに基づいてゲノム領域を分類し、複製ストレスに対する応答を比べてみたところ、G2/M期におけるDNA複製の未完了の程度はグループごとに大きく異なっていました(図4B)。さらに、計算モデルを用いた解析により、これらのDNA複製タイミングパターンには、異なる切断部位クラスを区別するための情報が含まれていることも示されました。以上の結果から、複製ストレスを受ける前のDNA複製タイミングパターンは、複製ストレスに対する応答や染色体切断クラスと関連しており、ゲノム領域の脆弱性には、その領域がもともと持つ固有の性質が深く関わっていることが示唆されました。
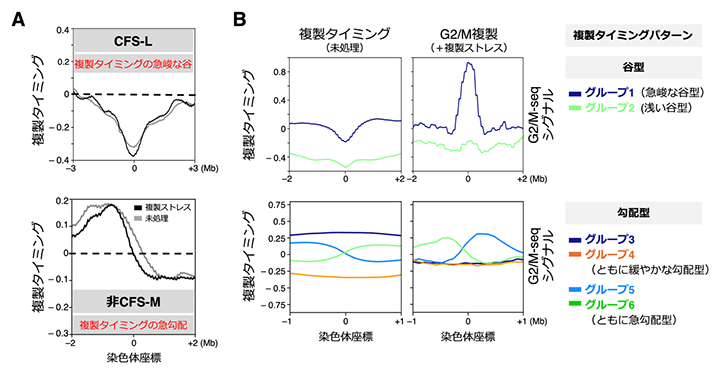
図4 異なる染色体切断クラスに特徴的な未処理細胞のDNA複製タイミングパターン
- A)染色体切断部位には、切断クラスごとに特徴的なDNA複製タイミングパターンが認められた。例えば、CFS-L(上段)と非CFS-M(下段)の切断部位は、それぞれ急峻(きゅうしゅん)な谷型と、複製タイミングがゲノム上で急激に変化する急勾配型のパターンを示した。
- B)未処理細胞におけるDNA複製タイミングパターンに基づいてゲノム領域を分類し、それぞれについて複製ストレスに対する応答を全ゲノムレベルで解析した。上段には、谷型のパターンを示す領域を、谷の形状に基づいて分類した結果のうち、二群を示す(グループ1、2)。下段には、勾配型のパターンを示す複製タイミング遷移領域を、勾配の度合いに基づいて四群に分類した結果を示す(グループ3~6)。複製ストレス下(アフィジコリン処理)で、G2/M期までDNA複製が未完了のまま残る割合は、グループごとに大きく異なっていた。以上の結果から、未処理細胞におけるDNA複製タイミングパターンは、複製ストレスに対する応答や染色体切断の生じやすさと関連することが示唆された。
最後に研究チームは、今回同定した切断部位クラスが、一連の解析に用いたヒトのがん細胞に特有のものかどうかを調べました。そこで、より正常に近い細胞として、2種類のヒト培養細胞とマウスES細胞を解析したところ、出現頻度には細胞種による違いがあったものの、五つの切断部位クラスすべてが確認されました。このことから、今回同定した切断部位クラスは、特定の細胞種や生物種に特有のものではなく、哺乳類ゲノムに広く見られる特徴であることが示唆されました。
- 注1)Takahashi S, Miura H, Shibata T, et al. Genome-wide stability of the DNA replication program in single mammalian cells. Nature Genetics 51(3), 529-540 (2019)
- 注2)Miura H, Takahashi S, Shibata T, et al. Mapping replication timing domains genome wide in single mammalian cells with single-cell DNA replication sequencing. Nature Protocols 15:4058-4100 (2020)
- 注3)2019年2月26日プレスリリース「ゲノムDNA複製の真の姿を捉えた」
今後の期待
本研究は、細胞集団を対象とした従来法では不可能であった1細胞レベルの解析を行うことで、複製ストレスによって生じる染色体切断部位を網羅的に同定し、これまで見過ごされていた複数の新たな染色体脆弱部位クラスを見いだすとともに、それらの特徴の一端を明らかにしました。ゲノムの脆弱領域は従来考えられていた以上に多様であり、ゲノム不安定性が複数の異なる経路を介して生じ得ることも示されました。
さらに、DNA複製タイミングをはじめ、それぞれのゲノム領域がもともと持つゲノム・エピゲノム上の特徴には、複製ストレスに対する応答の違いを区別するための情報が含まれていることも明らかになりました。これらの成果は、染色体脆弱性を規定する要因についての理解を深めるとともに、がんをはじめとする疾患に関連するゲノム不安定性のさらなる研究に向けた基盤となります。
本研究では、クラスごとに異なる染色体切断機構の存在が示唆されましたが、その分子機構の全容はまだ明らかではありません。今後は、それぞれの切断機構をさらに解明するとともに、染色体脆弱性が正常な発生過程や、がんをはじめとする疾患におけるゲノム不安定性にどのように関与するのかを明らかにしていく必要があります。また、DNA複製タイミングには異なる切断部位クラスを区別するための有用な情報が含まれていたことから、今後さらに多様なゲノム・エピゲノム情報を取り入れることで、計算モデルによる分類精度の向上が期待されます。
補足説明
- 1.ゲノム
生物が持つ遺伝情報全体のこと。DNAに記録されており、ヒトでは約30億塩基対から成る。 - 2.染色体切断
染色体を構成するDNAが切断されること。適切に修復されない場合、遺伝情報の欠失、重複、再編成などにつながることがある。 - 3.複製、DNA複製
細胞が分裂する前にDNAをコピーする過程。真核生物では、細胞周期においてDNAの複製が行われるS期([8]参照)に起きる。それぞれの娘細胞に完全な遺伝情報一式を受け渡すために必須の生命機能の一つ。 - 4.複製ストレス、アフィジコリン処理
複製ストレスは、正常なDNA複製が遅延したり妨げられたりした状態。DNA損傷や染色体切断が生じるリスクを高めることがある。本研究では、培養細胞に複製ストレスを与えるため、DNA合成阻害剤であるアフィジコリンを低濃度で培養液に添加した(アフィジコリン処理)。 - 5.ゲノム再編成
DNAの一部が欠失、重複、移動することなどによって、ゲノムの構造が変化すること。このようなゲノム再編成は、がん細胞で高頻度に認められる。 - 6.染色体脆弱部位(CFS)
DNA複製にストレスがかかった際に、特に染色体切断が生じやすいゲノム領域。CFSはCommon Fragile Sitesの略。 - 7.1細胞全ゲノムDNA複製解析法「scRepli-seq」、DNAコピー数
scRepli-seqは、増殖中の細胞でゲノムDNAが複製され、倍加していく過程を1細胞レベルで全ゲノム解析する方法。1細胞から抽出したゲノムDNAを全ゲノム増幅した後、次世代シーケンサーで解析し、ゲノムの各領域のDNAコピー数から、DNA複製前の領域と複製後の領域を識別する。一方、G1期([8]参照)細胞にscRepli-seqを適用すると、ゲノム全体のDNAコピー数を調べることができ、染色体の部分的な欠失や重複、その境界を検出できる。本研究では、この性質を利用して染色体切断部位をマッピングした。scRepli-seqはsingle-cell DNA Replication sequencingの略。 - 8.S期、G1期、G2/M期
増殖中の真核細胞が、細胞分裂から次の細胞分裂までにたどる一連の過程のことを細胞周期と呼ぶ。細胞周期のうち、細胞分裂が起こる期間を分裂期(M期)、それ以外の期間を間期という。間期はさらにG1期、S期、G2期に分けられ、S期にはDNA複製が行われ、通常はS期の間に完了する。細胞当たりのDNA量に基づく解析では、DNA複製後のG2期細胞とM期細胞はいずれもG1期細胞の約2倍のDNA量を持ち、両者を区別できないため、まとめて「G2/M期」と表記する。 - 9.複製タイミング遷移領域
ゲノム上で、DNAが複製されるタイミングが早い状態から遅い状態へと大きく変化する領域。このような領域では、DNA複製が開始される場所(複製開始点)が比較的少ないことが知られている。 - 10.A/Bコンパートメント境界
DNAの状態や遺伝子活動が異なる大きなゲノム領域(AコンパートメントとBコンパートメント)の境界。一般に、Aコンパートメントは遺伝子の働き(転写)が活発で、S期前半に複製される領域に対応し、Bコンパートメントは比較的不活発で、S期後半に複製される領域に対応する。 - 11.転写とDNA複製の衝突
DNAからRNAへ遺伝情報を読み取る「転写」とDNA複製が、同じDNA領域で同時に進行することで互いに衝突する現象。このような衝突によってDNA複製が妨げられ、DNA損傷のリスクが高まることがある。
研究支援
本研究は、理化学研究所運営費交付金、理研新領域開拓課題「Genome Building from TADs」、科学技術振興機構(JST)戦略的創造研究推進事業CREST「潜在的不安定性から読み解くゲノム設計原理(研究代表者:平谷伊智朗、JPMJCR20S5)」、文部科学省科学研究費助成事業新学術領域研究(研究領域提案型)「細胞分化にともなうクロマチンポテンシャルの変化とその分子基盤(研究分担者:平谷伊智朗、JP18H05530)」、日本学術振興会(JSPS)科学研究費助成事業挑戦的研究(開拓)「1細胞全ゲノム解析の第二世代化と多次元化への挑戦(研究代表者:平谷伊智朗、JP20K20582)」、同基盤研究(A)「マウス初期胚発生における体細胞型複製タイミング制御確立過程の解析(研究代表者:平谷伊智朗、JP25H00982)」、文部科学省国費外国人留学生制度(奨学金番号:180032、ジョティヴァナン・エルマライ)の助成を受けて行われました。
原論文情報
- Jothivanan Elumalai and Ichiro Hiratani, "Single-cell mapping of chromosome breaks identifies multiple fragile site classes with distinct DNA replication timing landscapes", Nature Communications, 10.1038/s41467-026-76451-1
発表者
理化学研究所
生命機能科学研究センター 発生エピジェネティクス研究チーム
チームディレクター 平谷 伊智朗(ヒラタニ・イチロウ)
(神戸大学 大学院医学系研究科 客員教授)
研修生 ジョティヴァナン・エルマライ(Jothivanan Elumalai)
(神戸大学 大学院医学研究科 博士課程)
 ジョティヴァナン・エルマライ
 平谷 伊智朗
発表者のコメント
This project brought together the fields of genomic instability and epigenetics and was made possible through the support of everyone in the laboratory, especially Hiratani-san. Coming from an engineering background, transitioning to basic science research required learning new concepts and approaches, but it also provided an invaluable opportunity to broaden my perspective, strengthen my critical thinking, and develop new experimental and computational skills. One of the most surprising findings for me was that RT landscapes contained information that could help distinguish different forms of chromosome fragility, highlighting how much we can learn from features already present in the genome. Looking back, I am grateful for everything I have learned throughout this journey. This experience has strengthened my commitment to pursuing fundamental questions in genome biology, and I look forward to continuing my journey toward becoming an independent researcher.(Jothivanan Elumalai)
本研究は、ゲノム不安定性とエピジェネティクスという二つの研究分野を融合したものであり、平谷先生をはじめ、研究室の皆さんの支えがあってこそ実現することができました。工学系のバックグラウンドを持つ私にとって、基礎科学研究への転向は、新しい概念や研究手法を一から学ぶ必要がありましたが、同時に、自分の視野を広げ、批判的思考力を養い、新たな実験・計算解析技術を身につける、かけがえのない機会となりました。今回の研究で私が最も驚いた発見の一つは、DNA複製タイミングのパターンに、異なるタイプの染色体脆弱性を区別する手がかりとなる情報が含まれていたことです。この結果から、ゲノムがもともと持っている特徴を調べることで、実に多くのことが分かるのだと実感しました。振り返ると、この研究を通して学んだすべてのことに感謝しています。この経験を通じて、ゲノム生物学の根本的な問いを追究したいという思いが一層強くなりました。今後も、独立した研究者を目指して歩み続けたいと思います。(ジョティヴァナン・エルマライ[平谷 伊智朗 訳])
本研究は、私の研究室では異色の「ゲノム不安定性」に関するものでした。研究室が持つ技術と大学院生で筆頭著者のジョティの興味が交差するところでテーマを選び、研究を開始しました。しかし、バックグラウンドの違いから当初は議論がかみ合わない場面もあり、私自身にとっても未知の分野であったため、何事にも時間がかかりました。幸い、ジョティがどこまでも前向きに、諦めずに取り組んでくれたので、彼の知識と解析能力が時間とともに大きく向上し、いつからか研究が一気に加速しました。そして、私たちが門外漢であったからこそ、常識にとらわれずに研究を進めることができ、これまで十分に認識されていなかった非CFS型の染色体切断を捉え、その分類に成功し、ゲノム不安定性に関する新たな知見を得ることができました。今どき珍しく著者はたったの2名ですが、内容は盛り沢山で、大変感慨深い論文です。(平谷 伊智朗)
JST事業に関する窓口
科学技術振興機構 戦略研究推進部 ライフイノベーショングループ
沖代美保(オキシロ・ミホ)
Tel: 03-3512-3524
Email: crest@jst.go.jp
報道担当
理化学研究所 広報部 報道担当
お問い合わせフォーム
神戸大学 企画部 広報課
Tel: 078-803-5106
Email: ppr-kouhoushitsu@office.kobe-u.ac.jp
科学技術振興機構 広報課
Tel: 03-5214-8404
Email: jstkoho@jst.go.jp