


理化学研究所(理研)生命機能科学研究センター フィジカルバイオロジー研究チームの早川 雅之 研究員(研究当時、現 客員研究員、京都工芸繊維大学 機械工学系助教)、バタチャージ・ビプラブ 研究員、柴田 達夫 チームディレクター、筑波大学 生命環境系の桑山 秀一 教授の共同研究チームは、集団の細胞数が時間とともに変化する「開放系[1]」において、細胞運動のわずかな偏りから、センチメートルスケールの左右非対称構造が形成されることを発見しました。
本研究成果は、細胞が持つわずかなキラリティ[2]が組織・個体レベルの左右非対称性へと発展する仕組みの理解や、開放系における集団パターン形成の原理の解明に貢献すると期待されます。
近年の物理学・生命科学では、自己駆動する要素(アクティブマター[3])間の相互作用から、秩序だった集団運動が生み出される現象が注目されています。さらに、個々の要素がキラリティを持つと、集団的な回転運動や渦などの左右非対称な構造が生じることが示されています。しかし、これまでの多くの研究は要素数が一定に保たれる「閉鎖系[1]」を対象としてきました。
今回、共同研究チームは、細胞性粘菌[4]を用いて、細胞が1カ所から継続的に供給される開放系を構築しました。その結果、細胞集団は供給源の周囲に密度の高い環状領域を形成した後、時計回りに回転するセンチメートルスケールのスパイラル構造を自発的に形成しました。このスパイラル構造の起源は、細胞同士が運動方向をそろえる相互作用と、個々の細胞が持つわずかな時計回りの細胞キラリティによるものであり、これらの性質を取り入れた数理モデルにおいてスパイラル構造が再現されることがシミュレーションで示されました。
本研究は、科学雑誌『Nature Communications』オンライン版(10月26日付:日本時間10月26日)に掲載されました。
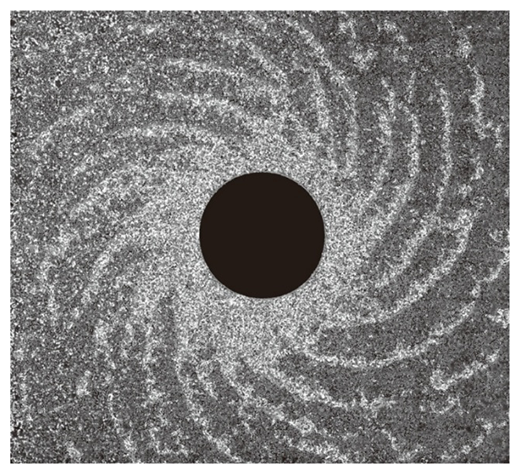
細胞性粘菌が形成する時計回りのスパイラル構造
背景
キラリティとは、左手と右手のように3次元の物体が自身の鏡像と重ね合わせることのできない左右非対称な性質です。生命現象では、DNAやタンパク質などの分子から、細胞、組織、個体に至る幅広い階層でキラリティが見られます。特に、細胞の形態や運動の左右の偏りは「細胞キラリティ」と呼ばれ、臓器や身体の左右非対称性の基盤に関わると考えられています注1)。こうした細胞の「利き手」ともいえる細胞キラリティが、組織や器官など多数の細胞から成る集団としての運動や構造にどのような影響を与えるかを理解することは、マクロレベルの生命現象における左右非対称性の形成原理を考える上で重要です。
ミクロスケールの細胞キラリティがどのように臓器レベルの運動や構造に現れるのかを理解するために、物理学からのアプローチによる、自己駆動する要素(アクティブマター)にキラリティを取り入れた「キラル[2]アクティブマター」の研究が進められてきました。個々の要素のキラリティと要素間の相互作用によって、集団的な回転運動や渦などの左右非対称な構造が生じることが示されています。しかし、その多くは要素数が一定に保たれる「閉鎖系」を対象としてきました。
一方、実際の生物では、発生や組織形成の過程で細胞が増殖したり、細胞が特定の場所から継続的に移動・供給されたりするなど、細胞集団は要素の数が変化する「開放系」として振る舞います。例えば、神経堤細胞[5]は、神経管背側から次々と離脱し、胚内を広範囲に移動します。このような開放系において、個々の細胞が持つキラリティが、集団としての左右非対称な構造の形成にどのように関わるのかは、これまで明らかになっていませんでした。
- 注1)2025年8月26日プレスリリース「細胞の"利き手"を決定する新原理を発見」
研究手法と成果
真核生物である細胞性粘菌は、単細胞期と多細胞期のライフサイクルを持っています。化学物質の濃度勾配に沿って移動する走化性[6]や、勾配に従って細胞が集合し多細胞体制を形成する過程は、細胞運動や形態形成のモデルとして広く研究されています。単細胞期の細胞性粘菌は、時々刻々と右に左に向きを変え、ランダムな方向に運動する遊走運動を示します。精度の高い計測でその運動を調べた最近の研究から、方向転換はわずかに右(時計回り)の方向に偏っていることが報告されています注2)。このような細胞運動の左右の偏りも細胞キラリティの一つです。
共同研究チームは、このわずかな偏りが集団レベルの左右非対称性へと発展する可能性を調べるため、細胞性粘菌を用いた「開放系」のモデル実験を試みました。具体的には、化学物質の影響を排除して細胞性粘菌の集団運動を観察するため、走化性を示さない細胞性粘菌の変異株注3)(KI細胞[6])を用いました。小さなくぼみを設けた寒天基盤に多数のKI細胞を配置して細胞の供給源とすることで、そこから細胞が周囲へ移動していく様子を観察しました(図1a)。最初、細胞集団は供給源の周囲に密度の高い環状領域を形成しました(図1b)。この環状領域から、時間経過とともに細胞で構成された複数の帯状構造が現れ、それらが外側へ伸びていく現象が観察されました。この帯状構造は時計回りに回転しながら供給源から離れる方向へ放射状に広がって、複数の腕を持つスパイラル構造を形成しました(図1c)。このスパイラル構造はセンチメートルスケールに達し、回転方向は一貫して時計回りでした。
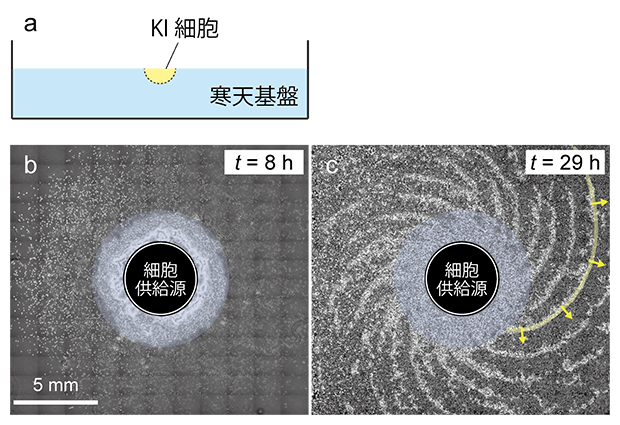
図1 複数の腕を持つスパイラル構造の形成
- (a)細胞性粘菌を用いた開放系モデルの模式図。直径5cmの培養皿に寒天基盤を入れ、中央部のくぼみにKI細胞を置いた。数時間後、細胞はくぼみから出て周囲に移動し始めた。
- (b)寒天のくぼみに細胞を配置してから8時間後。細胞供給源の周囲に高密度の環状領域が形成された。白色の点が細胞を示す。
- (c)配置29時間後。寒天を上から見たとき、時計回りに回転するセンチメートルスケールのスパイラル構造が形成された。黄色矢印は、スパイラルを構成する帯状構造の移動方向を示す。
次に、スパイラルを構成する細胞がどのように運動しているのかを詳しく解析しました(図2)。中心の環状領域では、細胞集団は細胞供給源を取り囲む時計回りの方向にそろって運動していることが分かりました。細胞間の運動方向のそろい具合を表す秩序パラメータ(0~1、1に近いほどそろっていることを示す)は0.94と非常に高い値を示しました。共同研究チームは、この領域を「回転コア」と名付けました。また、スパイラルの腕に当たる帯状構造においても、秩序パラメータは0.88と高い値を示し、細胞集団が方向をそろえて運動していることが分かりました。この帯状構造はほぼ一定の速度で広がっており、KI株でこれまでに報告されている進行波[7]状の集団運動注4、5)に相当します。一方、進行波と進行波の間にも細胞集団は存在していますが、個々の細胞はランダムな運動を示していました。これらの結果から、今回観察されたスパイラルは、細胞集団の運動方向がそろった回転コアと、そこから伸びる複数の進行波によって構成されていることが明らかになりました。
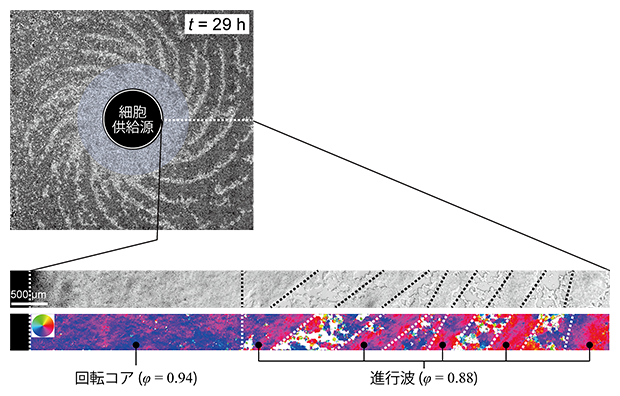
図2 スパイラル内部の細胞運動
スパイラル構造を形成した細胞集団(図2上部)において、点線で示した領域を拡大したものを下部に示す。下部上段は細胞の顕微鏡像、下段は画像解析によって求めた細胞の運動方向を示す。下段の色は左上の色相環に対応して運動方向を表し、同じ色がそろっている領域では細胞が同じ方向に運動していることを表す。特に、点線で区切った青や赤の濃い領域は秩序パラメータ(φ)が0.88と高い値を示す進行波を形成し、これらがスパイラルを構成していた。一方、進行波と進行波の間は、さまざまな方向に動いている細胞が集まっている領域であり、さまざまな色がある。白色は細胞のいない領域。
では、細胞はなぜ同じ方向にそろって動くのでしょうか。共同研究チームは、細胞間に互いに運動の向きをそろえる「配向相互作用」が働いている可能性を検討しました。低密度条件下において細胞同士の相互作用を調べたところ、二つの細胞が衝突すると、衝突前よりも互いの運動方向がそろう傾向があることが分かりました(図3a)。これは近くの細胞同士では「配向相互作用」が存在する証拠です。このような作用は、細胞間の物理的な接触や一過的な細胞間接着によって起こると考えられます。その結果、回転コアの中や、進行波の中の細胞集団が向きをそろえて動くことができるようになったと考えられます。
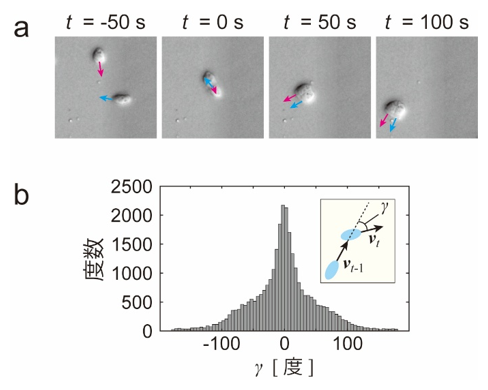
図3 KI株細胞の配向相互作用と細胞キラリティ
- (a)2個の細胞が衝突した際の様子。青と赤の矢印はそれぞれの細胞の運動方向を示す。衝突後、二つの細胞の運動方向がそろう。
- (b)細胞の運動方向の変化(γ)の分布。挿入図はγの定義を示し、方向転換後の角度γが負の場合は時計回り、正の場合は反時計回りの方向変化を表す。平均するとわずかに時計回りへの偏りが見られた。縦軸の度数は観察した数を示す(総観察数:29,819)。
次に、スパイラルの回転方向がランダムではなく、必ず時計回りになる起源を探しました。先述のように、野生型の細胞性粘菌の運動では、方向転換の際にわずかに右(時計回り)に偏ることが報告されています。共同研究チームは、時計回りの起源が個々の細胞の細胞キラリティにあると考え、変異体であるKI細胞でもこの偏りが見られるかを調べました。回転コアから少数の細胞を取り出し、その運動を観察したところ、個々の細胞は不規則に方向を変えながら運動する遊走運動を示し、運動方向の変化はほとんど左右対称に見えました(図3b)。しかし、さらに詳しく解析すると、時計回りの方向にわずかな偏りが確認されました。KI細胞の運動速度は1分間に約25マイクロメートル(25μm、1μmは100万分の1メートル)です。方向転換の平均値は1分間に時計回りに約2~3度と、精度の高い解析を行わないと見過ごしてしまうほど微小でした。
これらの観察結果から、KI細胞には、運動方向をそろえる配向相互作用と、時計回りの細胞キラリティという二つの性質があることが明らかになりました。
最後に、実験から明らかになった条件により、スパイラル構造が生じるのかを数理モデルで検証しました。今回の実験では、継続的に細胞が供給されることで環状領域やスパイラル構造を構成する細胞数は変化し、それらは、100万個以上に達すると見積もられました。こうした極めて膨大な数の要素を扱うシミュレーションから現象の本質を抽出するために、共同研究チームは、個々の細胞の詳細な性質を取り込んだモデルではなく、エッセンスをくみ取ったミニマルモデルを構築することにしました。アクティブマターの分野の嚆矢(こうし)ともいえるVicsek(ヴィチェック)モデル[8]は、ランダムに運動する要素の集団において要素間に配向相互作用が働くと、進行波が形成されることが知られているシンプルなモデルです。共同研究チームは、KI細胞の集団が示す進行波はVicsekモデルに見られる進行波に相当すると考え、このモデルにさらに、時計回りの細胞キラリティと、中心の供給源から新たな要素が継続的に供給される仕組みを導入した「開放系キラル ヴィチェックモデル(open chiral Vicsek model)」を構築しました。
シミュレーションの結果、回転コアとそこから伸びる進行波から成る、実験とよく似たスパイラル構造が再現されました(図4a)。さらに、細胞キラリティのない場合や強さが極めて弱い場合には、ほぼ同心円状の構造(図4b)が現れることからスパイラル構造の起源は個々の細胞のキラリティにあると結論されました。一方、細胞キラリティの強さが強いと回転コアのみが残るスポット状の構造(図4c)が現れることから、キラリティの強さが中間的な領域においてスパイラル構造が現れることが分かりました。
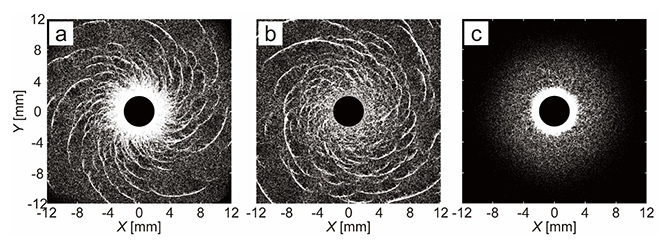
図4 数理モデルで再現された集団構造
- (a)細胞キラリティの強さが中間的な場合、中心の回転コアから複数の帯状構造が伸びるスパイラル構造が形成される。
- (b)細胞キラリティの強さが弱い場合、帯状構造は同心円状に広がったパターンを形成する。
- (c)細胞キラリティの強さが強い場合、中心の回転コアのみが残るスポット状パターンとなる。
このようにして現れたスパイラルの形態は、実験と数理モデルの両方に共通して、「円のインボリュート(involute of a circle)[9]」として知られる美しい数学構造を持つことも明らかになりました。
以上の結果から、細胞レベルのキラリティから集団レベルの大規模な左右非対称構造が生み出される仕組みは、以下のように説明できます。KI細胞の1細胞はほとんどランダムに運動しますが、方向転換の平均値がわずかに右方向に偏っています。このような微弱なキラリティは通常運動のランダム性に埋もれてしまい、それがそのまま積み上がっても大規模な左右性は生まれません。しかし、細胞間の配向相互作用で細胞集団の動く方向がそろってくると、運動のランダム性が抑制され微弱だったキラリティが顕在化します。さらに、細胞の供給源の周りの高密度の領域に、配向相互作用によってできた回転コアが生まれ、その周囲では、密度が少し低下することで進行波が形成されたと考えられます。つまり、回転コアが進行波を時計回りの方向にガイドすることで、センチメートルスケールのスパイラルパターンが生まれます。このように、微弱な細胞キラリティが配向相互作用と細胞の供給によって増幅されることで、細胞集団の大規模な左右非対称性が生まれることが明らかになりました。
- 注2)A. Tamada, M. Igarashi, Nat. Commun. 8, 20150399 (2017)
- 注3)H. Kuwayama, S. Ishida, P. J. M. van Haastert, J. Cell Biol. 123, 1453-1462 (1993)
- 注4)H. Kuwayama, S. Ishida, Sci. Rep. 3, 2272 (2013)
- 注5)M. Hayakawa, T. Hiraiwa, Y. Wada, H. Kuwayama, T. Shibata, eLife 9, e53609 (2020)
今後の期待
本研究では、個々の細胞が持つわずかなキラリティが、細胞同士の相互作用や継続的な細胞供給と組み合わさることで、集団レベルの大きな左右非対称性として現れることを示しました。発生や組織形成の過程では、細胞の増殖や移動によって新たな細胞が絶えず供給されています。今後、こうした生体内の開放系における細胞集団の研究へと展開することで、細胞レベルのわずかな左右差が、組織や個体の左右非対称性へとつながる仕組みの理解が進むと期待されます。
補足説明
- 1.開放系、閉鎖系
要素の数が変わらないシステムを閉鎖系、変わる系を開放系と呼ぶ。 - 2.キラリティ、キラル
キラリティとは、物体が鏡像(鏡に映した像)と完全に重ね合わせることができない性質を指す。例えば私たちの手は、左手と右手で鏡像関係にあり、左右の手を完全に重ね合わせることはできないため、キラリティがある(キラル)といえる。 - 3.アクティブマター
エネルギーを消費して運動や力を生成する要素が集まったシステム。鳥や魚の群れといった生物個体の集団だけではなく、細胞集団、アクトミオシンのような細胞骨格や非生物の人工粒子系などに対しても用いられる。 - 4.細胞性粘菌
真核生物であり原生生物界に属する。森林土壌などに生息する。ライフサイクル(生活環)において単細胞期と多細胞期がある。栄養が豊富な環境では単細胞アメーバとして増殖するが、栄養飢餓に陥るとアメーバ細胞が集合して多細胞期が開始する。Dictyostelium discoideum(和名キイロタマホコリカビ)の単細胞アメーバは、哺乳類の白血球細胞と同じようにアメーバ運動するため、細胞運動や走化性([6]参照)のモデル生物として古くから利用されてきた。 - 5.神経堤細胞
脊椎動物の初期発生では、将来の神経管となる神経板の両側に、神経堤と呼ばれる構造が形成される。神経板が閉鎖して神経管となる際、神経堤から脱落した神経堤細胞は、胚のさまざまな部位に遊走する細胞群となる。 - 6.走化性、KI細胞
生物が化学物質の濃度勾配に沿って移動することを「走化性」と呼ぶ。細胞性粘菌は栄養飢餓になると自ら「cAMP(環状アデノシン一リン酸)」というシグナル分子を産生、分泌し、これに対して走化性を示すことで細胞が集合し多細胞体の形成が始まる。「KI細胞」は、cAMPに対する走化性を失った細胞性粘菌の変異株で、1993年に桑山教授(当時、京都大学大学院博士課程)らによって単離された。 - 7.進行波
空間内をある方向に進む波。 - 8.Vicsek(ヴィチェック)モデル
自ら動く粒子の集団において、近隣の粒子が互いに運動の向きをそろえるというルールの下で現れる集団の挙動を調べるためのモデル。運動の向きをそろえる傾向の強さや粒子の密度に応じて複数の挙動を示す。 - 9.円のインボリュート(involute of a circle)
固定されて回転しない円形のリールに巻き取られた糸を、緩まないように張ったまま、円と同じ平面内でほどいていくと、糸の端点はインボリュート曲線を描く。この曲線上の法線(曲線上にある点における接線に垂直な直線)は、常に元の円に接する。
研究支援
本研究は、理研運営費交付金で実施し、日本学術振興会(JSPS)科学研究費助成事業学術変革領域研究(A)「メカノケミカルフィードバックによる自律的秩序化原理の理論展開(研究代表者:柴田達夫、JP22H05170)」、同基盤研究(C)「細胞運動の左右非対称性に起因した左右非対称な多細胞構造の形成(研究代表者:早川雅之、JP19K12770)」による助成を受けて行われました。
原論文情報
- Masayuki Hayakawa, Biplab Bhattacherjee, Hidekazu Kuwayama, Tatsuo Shibata, "Emergence of chiral multi-armed spirals in an open system of migrating cells under continuous cell supply", Nature Communications, 10.1038/s41467-026-78179-4
発表者
理化学研究所
生命機能科学研究センター フィジカルバイオロジー研究チーム
研究員(研究当時)早川 雅之(ハヤカワ・マサユキ)
(現 客員研究員、京都工芸繊維大学 機械工学系 助教)
研究員 バタチャージ・ビプラブ(Bhattacherjee Biplab)
チームディレクター 柴田 達夫(シバタ・タツオ)
筑波大学 生命環境系
教授 桑山 秀一(クワヤマ・ヒデカズ)
 早川 雅之
 バタチャージ・ビプラブ
 桑山 秀一
 柴田 達夫
発表者のコメント
この現象を発見したとき、大きな驚きとともに、美しいスパイラルにひかれ、何度も結果を見返したことをよく覚えています。個々の細胞がもつごくわずかなキラリティが、これほど大規模で秩序だったパターンとして現れることに、面白さを感じました。今後もキラリティに限らず、こうした秩序が生まれる仕組みをさらに探るとともに、その原理を生かした新しい技術やものづくりにも目を向けていきたいと思います。(早川 雅之)
私は、明確なキラリティのない細胞が、どのように集団でこのような大規模でキラルな構造を形成するのかに魅了されました。実験からキラリティが細胞間の相互作用ではなくて、細胞自身に内在する性質であることが分かりました。さらに研究を進めると、キラリティだけではこの構造形成を十分には説明できないことが分かりました:(i)細胞内在的なキラリティ、(ii)配向相互作用、そして、(iii)細胞の供給とそれによって作られる密度勾配、が重要な要素であることが分かりました。私たちの研究は、微視的なキラリティをマクロに増幅する機構を提示し、生物の左右非対称性の理解に対して新たな方向を切り拓いているかもしれません。(バタチャージ・ビプラブ[柴田 達夫 訳])
体や器官の形態や働きの左右非対称性の起源は分子のキラリティだと考えられています。しかし、キラリティの情報が分子から多細胞組織の階層を縦断する仕組みには多くの謎が残されています。この研究では揺らぐ細胞に埋もれたキラリティが、細胞間の相互作用と細胞が供給される開放系の作用によって、センチメートルスケールの多細胞体のキラリティに増幅されるメカニズムを明らかにしました。今後もなぜ生き物は非対称なのかの謎に迫っていきたいと思います。(柴田 達夫)
報道担当
理化学研究所 広報部 報道担当
お問い合わせフォーム
京都工芸繊維大学 総務企画課広報係
Tel: 075-724-7016
Email: kit-kisya@jim.kit.ac.jp
筑波大学 広報局
Tel: 029-853-2040
Email: kohositu@un.tsukuba.ac.jp